Descubra a fascinante mecânica por trás da vida vegetal, desvendando os segredos das minúsculas estruturas que controlam a respiração e a transpiração das plantas. Este artigo irá guiá-lo por um mergulho profundo no universo dos estômatos, desde seu funcionamento básico até as complexidades de sua regulação. Prepare-se para uma aula completa, repleta de insights, exemplos práticos e exercícios desafiadores.
A Essência Oculta: O que São Estômatos e Sua Função Vital
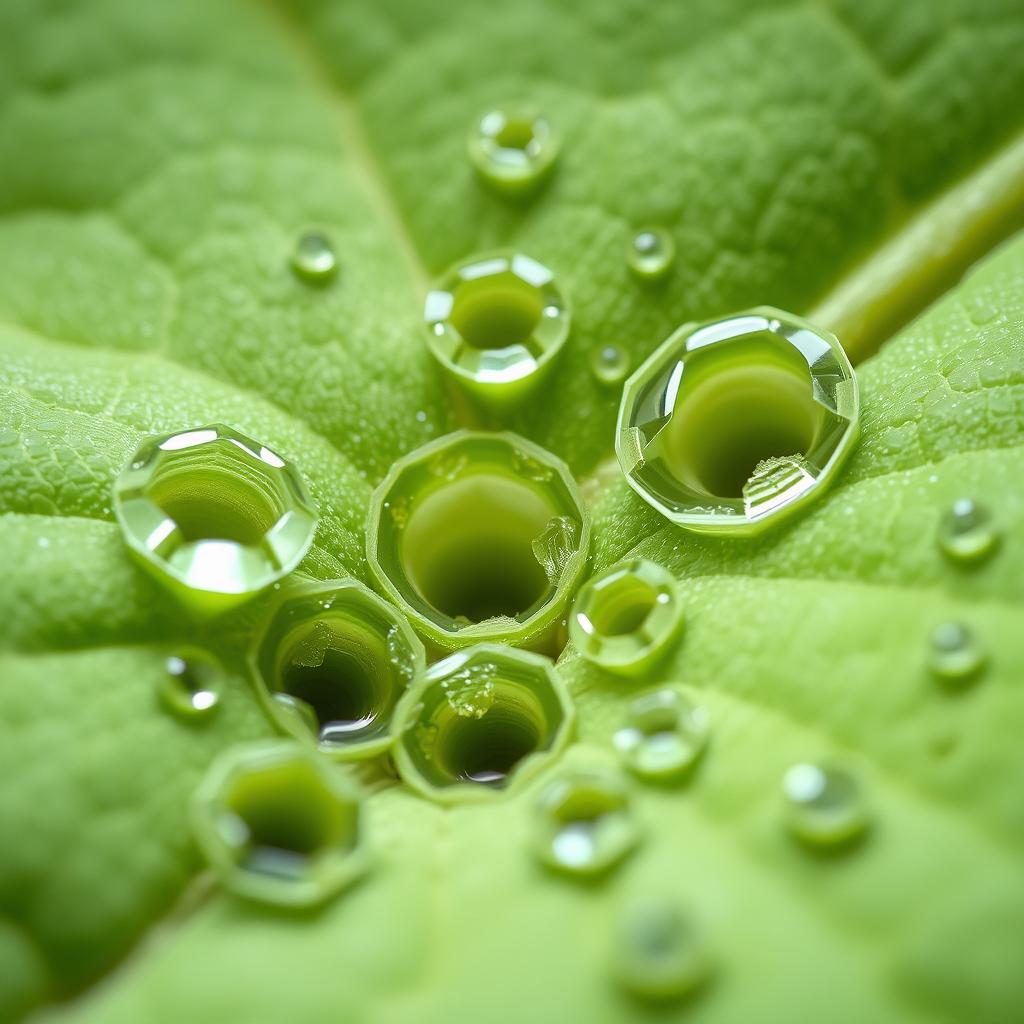
Imagine pulmões microscópicos, mas para plantas. É exatamente isso que os estômatos representam. São minúsculas aberturas, geralmente encontradas na superfície das folhas, embora também possam ser observadas em caules jovens. Estas estruturas, invisíveis a olho nu, são a ponte vital entre o ambiente interno da planta e a atmosfera externa, um portal essencial para a manutenção da vida e para o equilíbrio ecológico do nosso planeta.
A função primordial dos estômatos reside na regulação da troca gasosa. Através deles, o dióxido de carbono (CO2), vital para a fotossíntese, entra na planta. Simultaneamente, o oxigênio (O2), subproduto da fotossíntese, e o vapor d’água, resultado da transpiração, são liberados para a atmosfera. É um balé contínuo e finamente ajustado de entrada e saída.
Cada estômato é composto por duas células-guarda (também chamadas células oclusivas), em forma de rim ou haltere, que circundam um poro central, a abertura estomática propriamente dita. Estas células-guarda são únicas, pois contêm cloroplastos, ao contrário da maioria das células epidérmicas circundantes, o que lhes permite realizar fotossíntese e, consequentemente, influenciar seu próprio metabolismo e turgor.
As células-guarda são as mestras desse sistema. Seu formato e volume alteram-se em resposta a uma miríade de sinais, controlando a abertura e o fechamento do poro estomático. Este controle é absolutamente crítico para a sobrevivência da planta, pois balanceia a necessidade de capturar CO2 para a produção de energia com a imperativa necessidade de conservar água. Em um mundo onde a água é frequentemente um recurso limitado, a eficiência estomática é uma característica evolutiva de tirar o fôlego.
A transpiração, o processo de perda de vapor d’água pelas plantas, pode parecer uma desvantagem, mas é crucial. Ela cria uma força de sucção que puxa a água e os nutrientes minerais das raízes até as folhas, um fenômeno conhecido como tensão-coesão-adesão. Sem essa “bomba” de transpiração, o transporte de água e minerais seria severamente comprometido, impactando o crescimento e o desenvolvimento da planta. Assim, os estômatos não são meros portões passivos, mas sim reguladores ativos de fluxos vitais.
Mecanismos Intrínsecos: A Coreografia da Abertura Estomática
A abertura dos estômatos é um processo complexo, orquestrado por uma série de fatores ambientais e sinais internos da planta. Compreender essa dança é fundamental para desvendar a resiliência do reino vegetal.
A Luz: O Grande Maestro
A luz é, sem dúvida, o sinal mais potente para a abertura estomática. Quando a luz solar incide sobre as folhas, ela desencadeia uma cascata de eventos nas células-guarda. O primeiro passo é a ativação da fotossíntese dentro dos cloroplastos das próprias células-guarda. A fotossíntese consome CO2, e essa redução na concentração interna de CO2 é um sinal direto para a abertura.
Além disso, a luz azul, em particular, é percebida por fotorreceptores específicos, como a zeaxantina, nas membranas das células-guarda. Essa percepção ativa uma bomba de prótons (H+) impulsionada por ATP na membrana plasmática. Esta bomba expulsa prótons para fora das células-guarda, criando um gradiente eletroquímico.
O Papel Vital dos Íons Potássio (K+)
O gradiente de prótons criado pela bomba de H+ é essencial. Ele serve como força motriz para a entrada massiva de íons potássio (K+) nas células-guarda, através de canais iônicos específicos. O influxo de K+ é acompanhado pela entrada de ânions, como o cloreto (Cl-) ou malato (um ácido orgânico sintetizado nas células-guarda a partir do amido).
A acumulação de K+ e outros solutos no citoplasma e vacúolos das células-guarda reduz drasticamente seu potencial osmótico. Isso significa que a concentração de solutos dentro das células-guarda se torna muito maior do que nas células epidérmicas circundantes.
A Inevitável Entrada de Água
Devido à diferença de potencial osmótico, a água, seguindo seu gradiente de concentração, flui passivamente para dentro das células-guarda por osmose. Essa entrada de água aumenta a pressão de turgor dentro das células.
As células-guarda possuem paredes celulares com espessuras desiguais: a parede interna, adjacente ao poro estomático, é mais espessa e menos elástica, enquanto a parede externa é mais fina e elástica. À medida que a pressão de turgor aumenta, a parede externa mais fina se expande para fora, puxando a parede interna mais espessa para dentro, como se fosse um par de bananas se curvando para fora e criando uma abertura central. Este movimento causa a abertura do poro estomático.
Concentração de CO2: Um Sinal Duplo
Paradoxalmente, embora a entrada de CO2 seja o objetivo da abertura, uma baixa concentração de CO2 dentro da folha (geralmente resultado de alta taxa fotossintética) é um sinal potente para a abertura estomática. As células-guarda monitoram indiretamente os níveis de CO2. Quando o CO2 é baixo, a planta “percebe” que precisa abrir os estômatos para capturar mais.
Ritmo Circadiano: O Relógio Interno
As plantas possuem um relógio biológico interno, o ritmo circadiano, que antecipa as mudanças diárias de luz e escuridão. Mesmo em condições de luz constante, muitos estômatos exibirão um padrão de abertura e fechamento que mimetiza o ciclo dia-noite, demonstrando uma regulação endógena. Este ritmo ajuda a planta a otimizar sua abertura estomática antes mesmo da luz plena da manhã.
Fechamento Estomático: A Estratégia de Conservação
O fechamento dos estômatos é tão crucial quanto sua abertura, especialmente em momentos de estresse. É o mecanismo de defesa da planta contra a desidratação e a perda excessiva de água.
Escuridão: O Fim da Festa
Quando a luz desaparece ao anoitecer, a fotossíntese nas células-guarda cessa. Isso leva a um aumento da concentração de CO2 dentro da folha (devido à respiração celular e à falta de consumo fotossintético) e, consequentemente, a uma diminuição no bombeamento de prótons e na entrada de K+. Os canais de efluxo de K+ são ativados, e os íons potássio começam a sair das células-guarda.
Estresse Hídrico: O Alarme de Seca
A condição mais dramática para o fechamento estomático é o estresse hídrico. Quando o solo está seco e a planta começa a perder mais água do que consegue absorver, ela produz um hormônio vital: o ácido abscísico (ABA).
O ABA é o “hormônio do estresse” das plantas. Ele é sintetizado nas raízes e transportado para as folhas quando há escassez de água. Ao chegar às células-guarda, o ABA ativa canais de efluxo de íons (como K+ e Cl-) e inibe a bomba de prótons. Isso resulta em uma rápida saída de K+ e outros solutos das células-guarda.
Com a perda de solutos, o potencial osmótico das células-guarda aumenta (tornando-se menos negativo), e a água, por osmose, sai das células-guarda. A perda de água leva à diminuição da pressão de turgor, fazendo com que as células-guarda murchem e se aproximem, fechando o poro estomático. Este é um mecanismo de sobrevivência fundamental para evitar a desidratação letal.
Alta Concentração de CO2
Uma alta concentração de CO2 interno na folha, que pode ocorrer à noite ou em situações de estresse que inibem a fotossíntese, também sinaliza o fechamento estomático. A planta “entende” que não precisa de mais CO2 e, portanto, pode fechar seus portões para conservar água.
Temperatura Extrema
Temperaturas excessivamente altas podem levar ao fechamento estomático, mesmo que a disponibilidade de água seja razoável. Isso ocorre porque o calor aumenta drasticamente a taxa de transpiração, levando a uma perda de água mais rápida do que a planta pode repor, induzindo um estresse hídrico aparente e o acúmulo de ABA. Além disso, temperaturas extremas podem danificar o maquinário fotossintético, tornando a abertura dos estômatos ineficiente.
Patógenos e Respostas de Defesa
Curiosamente, as plantas também podem fechar seus estômatos como uma primeira linha de defesa contra a entrada de patógenos. Bactérias e fungos frequentemente penetram na planta através dessas aberturas. A detecção de certas moléculas microbianas pode levar ao rápido fechamento estomático, uma estratégia de quarentena que visa limitar a infecção.
Interações e Nuances: A Complexidade da Regulação Estomática
A regulação estomática não é um processo isolado, mas uma intrincada rede de interações entre múltiplos fatores. A resposta de uma planta a um determinado estímulo é frequentemente modulada pela presença e intensidade de outros.
A Eficiência no Uso da Água (WUE)
A eficiência no uso da água (WUE – Water Use Efficiency) é uma métrica crucial que reflete a quantidade de biomassa produzida por unidade de água transpirada. Plantas com alta WUE conseguem produzir mais matéria seca com menos água, e a regulação estomática é o principal determinante dessa eficiência. Em ambientes áridos, a seleção natural favoreceu plantas com controle estomático extremamente preciso, abrindo-se apenas o suficiente para a assimilação de CO2 e fechando-se rapidamente ao menor sinal de estresse hídrico.
Plantas CAM: Uma Estratégia Noturna
Enquanto a maioria das plantas (C3 e C4) abre seus estômatos durante o dia, as plantas de metabolismo ácido de crassuláceas (CAM) exibem uma estratégia notável. Elas abrem seus estômatos à noite para capturar CO2 e armazená-lo como ácido málico. Durante o dia, com os estômatos fechados para minimizar a perda de água em ambientes quentes e secos, o CO2 armazenado é liberado internamente para a fotossíntese. Cactos e abacaxis são exemplos clássicos dessa adaptação, um testemunho da incrível diversidade evolutiva na regulação estomática.
A Curiosidade dos Estômatos Aquáticos
Em plantas aquáticas, os estômatos podem apresentar adaptações muito diferentes. Em plantas flutuantes (como vitórias-régias), os estômatos estão localizados apenas na superfície superior da folha. Em plantas submersas, muitos estômatos são vestigiais ou completamente ausentes, uma vez que a troca gasosa ocorre diretamente pela superfície da folha na água. Isso ilustra como a pressão ambiental molda a morfologia e a função estomática.
Erros Comuns de Interpretação
É comum encontrar equívocos sobre os estômatos. Um erro frequente é confundir “estômato” (a abertura) com “estroma” (a matriz fluida dentro do cloroplasto). Outro equívoco é acreditar que os estômatos abrem exclusivamente durante o dia; as plantas CAM provam o contrário. Além disso, muitos não compreendem a dinâmica da entrada e saída de K+, que é o motor osmótico fundamental. Entender que o potássio não é “consumido”, mas sim um mensageiro osmótico, é crucial.
Aplicações Práticas e Exercícios para Fixar o Conhecimento
Compreender a regulação estomática vai além da teoria; tem implicações diretas na agricultura, na horticultura e na compreensão das mudanças climáticas.
Impacto na Agricultura e Horticultura
No cultivo de plantas, a manipulação do ambiente para otimizar a abertura estomática é uma prática comum. Em estufas, o controle da umidade e dos níveis de CO2 pode influenciar diretamente a produtividade. Produtores buscam manter um equilíbrio para maximizar a fotossíntese sem causar estresse hídrico. A irrigação por gotejamento, por exemplo, fornece água diretamente às raízes, minimizando a perda por evaporação do solo e permitindo que a planta mantenha seus estômatos abertos por mais tempo. Variedades de culturas com estômatos mais eficientes ou com menor densidade estomática são pesquisadas para áreas com escassez hídrica.
Exercícios de Aplicação
Para consolidar seu aprendizado, reflita sobre os seguintes cenários:
Exercício 1: Cenário de Estresse
Você é um agrônomo e percebe que as folhas de uma lavoura de milho estão murchando no meio da tarde, mesmo após uma irrigação matinal.
- Qual é a provável resposta dos estômatos dessas plantas e por quê?
- Que hormônio vegetal estaria envolvido nessa resposta e qual é sua função?
- Que medidas você poderia sugerir para mitigar esse estresse sem aumentar drasticamente o consumo de água?
Exercício 2: O Experimento da Luz
Um estudante cultiva uma planta em um ambiente controlado e decide simular um dia extremamente longo, mantendo a luz acesa por 24 horas.
- O que aconteceria com os estômatos da planta durante as horas que normalmente seriam noturnas, considerando apenas o fator luz?
- Se a planta fosse uma espécie CAM, qual seria a diferença na resposta estomática e por quê?
- Qual seria o impacto a longo prazo de manter os estômatos abertos por períodos prolongados, especialmente se a disponibilidade de água fosse limitada?
Exercício 3: A Vantagem da Umidade
Em um dia quente e úmido, os estômatos de uma planta tendem a permanecer mais abertos do que em um dia igualmente quente, mas seco.
- Explique por que a alta umidade relativa do ar favorece a abertura estomática, mesmo com altas temperaturas.
- Qual seria a desvantagem para a planta de manter os estômatos abertos em um dia quente e seco?
- Por que o manejo da umidade em estufas é tão crucial para o crescimento das culturas?
Perguntas Frequentes (FAQs)
1. Todos os estômatos se abrem e fecham ao mesmo tempo?
Não necessariamente. Embora a maioria siga padrões gerais (abertura diurna, fechamento noturno ou sob estresse), pode haver variações dentro da mesma folha ou entre folhas de diferentes idades. Além disso, a intensidade dos estímulos ambientais pode levar a respostas graduais.
2. As raízes têm estômatos?
Não, as raízes não possuem estômatos. Sua função principal é absorver água e nutrientes do solo, e a presença de estômatos seria contraproducente, levando à perda de água em um ambiente onde a absorção é prioridade. A troca gasosa nas raízes ocorre por difusão através da epiderme e lenticelas em caules e raízes mais velhos.
3. Qual a importância do potássio para a planta além da abertura estomática?
O potássio é um macronutriente essencial e desempenha papéis vitais em muitos processos fisiológicos. Ele é crucial na ativação enzimática, na síntese de proteínas e amido, no transporte de açúcares, na manutenção do equilíbrio de carga e, é claro, na regulação osmótica, incluindo a abertura e fechamento dos estômatos.
4. Plantas em ambientes muito úmidos (como florestas tropicais) têm estômatos diferentes?
Em ambientes de alta umidade, as plantas podem ter uma densidade estomática maior e seus estômatos podem permanecer abertos por mais tempo, pois a perda de água não é uma ameaça tão grande. Algumas podem até apresentar estruturas chamadas hidatódios, que liberam água líquida (gutação) quando a transpiração é insuficiente para o fluxo de seiva.
5. O que acontece se os estômatos de uma planta ficarem permanentemente fechados ou abertos?
Se estômatos ficarem permanentemente fechados, a planta não conseguiria absorver CO2 para a fotossíntese, levando à inanição. Se ficassem permanentemente abertos, a planta perderia água excessivamente, resultando em desidratação e morte, especialmente em ambientes secos. O equilíbrio é a chave para a sobrevivência.
6. As plantas se adaptam à escassez de água com o tempo?
Sim, as plantas podem exibir aclimatação e adaptação evolutiva à escassez de água. Isso inclui o desenvolvimento de raízes mais profundas, maior produção de ABA, maior sensibilidade estomática, aumento da cera cuticular para reduzir a transpiração cuticular e, em alguns casos, modificações morfológicas como folhas menores e mais espessas.
7. O que é densidade estomática e por que é importante?
A densidade estomática refere-se ao número de estômatos por unidade de área da folha. É um traço adaptativo importante. Uma maior densidade permite maior troca gasosa, mas também maior perda de água. Plantas adaptadas a ambientes secos geralmente têm menor densidade estomática ou estômatos reclusos (em criptas) para minimizar a transpiração.
Conclusão: Um Mundo de Precisão Microscópica
Os estômatos são, sem dúvida, uma das maravilhas da engenharia biológica. Essas estruturas microscópicas, através de um complexo jogo de íons, água e sinais hormonais, orquestram a vida das plantas e, por extensão, a de todo o nosso ecossistema. Eles representam o equilíbrio delicado entre a busca por energia e a imperativa conservação de recursos. A compreensão de sua abertura e fechamento não é apenas um feito acadêmico, mas uma ferramenta poderosa para aprimorar nossas práticas agrícolas, otimizar o uso da água e enfrentar os desafios das mudanças climáticas. Cada folha que balança ao vento é um testemunho silencioso de uma dança molecular perfeitamente coreografada, um lembrete da inteligência inerente à natureza.
Esperamos que este mergulho profundo no universo dos estômatos tenha sido tão esclarecedor quanto inspirador. Que sua curiosidade continue a florescer! Deixe seus comentários e compartilhe suas percepções sobre este tema fascinante. Sua participação enriquece nossa comunidade.
O que são estômatos e qual sua importância fundamental para as plantas?
Os estômatos são pequenas estruturas porosas encontradas principalmente na epiderme das folhas das plantas, embora também possam ser encontrados em caules jovens. A palavra “estômato” deriva do grego stoma, que significa boca, e sua estrutura se assemelha a uma pequena abertura ou fenda. Cada estômato é composto por duas células-guarda (também conhecidas como células-oclusivas), que são células especializadas em forma de feijão, ou halteres em gramíneas, que circundam um poro central, denominado ostíolo. Essas células-guarda são as únicas células epidérmicas que contêm cloroplastos e, portanto, são capazes de realizar fotossíntese, uma característica que desempenha um papel crucial na sua capacidade de regular a abertura e o fechamento do poro. A importância fundamental dos estômatos para a vida vegetal e, consequentemente, para a vida no planeta, reside em sua função de intermediar as trocas gasosas entre a planta e a atmosfera. Eles são a principal via pela qual o dióxido de carbono (CO2) essencial para a fotossíntese entra na planta e por onde o oxigênio (O2), produto da fotossíntese, e o vapor d’água, resultante da transpiração, são liberados. A capacidade de regular essas trocas gasosas é vital para a sobrevivência e o crescimento das plantas. Sem os estômatos, ou se eles estivessem permanentemente abertos, as plantas perderiam água em excesso por transpiração, levando à desidratação e morte. Se estivessem permanentemente fechados, a absorção de CO2 seria severamente limitada, impedindo a fotossíntese e, consequentemente, a produção de açúcares para energia e crescimento. Portanto, os estômatos atuam como portões de controle, equilibrando a necessidade de absorver CO2 para a produção de energia com a necessidade de conservar água, uma adaptação evolutiva extraordinária que permitiu às plantas colonizar ambientes terrestres diversos. Sua regulação fina permite que as plantas otimizem a fotossíntese sob condições favoráveis e minimizem a perda de água em situações de estresse hídrico, tornando-os componentes essenciais para o metabolismo e a resiliência vegetal.
Descreva o mecanismo básico de abertura dos estômatos em nível celular.
O mecanismo básico de abertura dos estômatos é um processo notável de regulação hidrostática, orquestrado principalmente pelas células-guarda. A abertura do ostíolo (o poro estomático) ocorre quando as células-guarda absorvem água e aumentam sua turgidez, curvando-se para fora e separando-se uma da outra. Esse processo é impulsionado por uma série de eventos bioquímicos e físicos. O evento inicial, e talvez o mais crítico, é o influxo de íons potássio (K+) para dentro das células-guarda. Em resposta a sinais específicos, como a luz azul e baixas concentrações de CO2 dentro da folha, a membrana plasmática das células-guarda se torna hiperpolarizada devido à ativação de bombas de prótons (H+-ATPases). Essas bombas utilizam energia do ATP (produzido na fotossíntese ou respiração) para bombear prótons para fora das células-guarda, criando um gradiente eletroquímico. Esse gradiente, com o interior da célula mais negativo, atrai íons potássio carregados positivamente para o citosol através de canais de potássio específicos na membrana. Para manter o equilíbrio de cargas, o influxo de K+ é acompanhado pelo influxo de contra-íons, como cloreto (Cl-) ou a síntese de malato (um ácido orgânico) a partir do amido armazenado nas células-guarda. O acúmulo desses solutos (K+, Cl-, malato) no citoplasma e, mais importantemente, no vacúolo central das células-guarda, diminui drasticamente o potencial hídrico dentro da célula. De acordo com os princípios da osmose, a água se move de uma área de maior potencial hídrico (o protoplasto das células vizinhas e o apoplasto) para uma área de menor potencial hídrico (o interior das células-guarda). A entrada maciça de água resulta no aumento da pressão de turgor contra as paredes celulares. As células-guarda possuem paredes celulares de espessura desigual: a parede interna (adjacente ao ostíolo) é mais espessa e menos elástica, enquanto a parede externa é mais fina e elástica. Quando a pressão de turgor aumenta, a parede externa mais elástica se expande e se curva para fora, puxando a parede interna mais espessa com ela e, assim, abrindo o ostíolo. Este processo é altamente regulado e permite que a planta controle precisamente o tamanho da abertura estomática, adaptando-se às condições ambientais para otimizar a fotossíntese e minimizar a perda de água. Compreender este intrincado mecanismo é fundamental para a aula de botânica, pois ele representa um exemplo primoroso de como as células vegetais utilizam os princípios físicos e químicos para desempenhar funções vitais.
Quais são os principais fatores ambientais que influenciam a abertura e o fechamento dos estômatos?
A regulação da abertura e do fechamento dos estômatos é um processo dinâmico e complexo, influenciado por uma gama de fatores ambientais que a planta monitora continuamente para otimizar seu desempenho e sobrevivência. Os principais fatores incluem: a luz, a concentração de dióxido de carbono (CO2), a disponibilidade de água (e, consequentemente, o estresse hídrico), e a temperatura. Cada um desses fatores interage de maneiras sutis e complexas, ditando a resposta estomática. A luz é um dos mais potentes sinalizadores. A maioria das plantas abre seus estômatos na presença de luz para permitir a entrada de CO2 para a fotossíntese, e os fecha no escuro para economizar água. A luz azul é particularmente eficaz em induzir a abertura estomática, ativando as bombas de prótons nas células-guarda. A concentração de CO2 dentro da folha (Ci) é um feedback direto da atividade fotossintética e um regulador crucial. Baixas concentrações de CO2 intracelular (Ci), que indicam alta demanda por CO2 para a fotossíntese, tendem a promover a abertura estomática. Por outro lado, altas concentrações de CO2 (Ci), sinalizando que a fotossíntese está saturada ou inibida, causam o fechamento dos estômatos para evitar a perda desnecessária de água. A disponibilidade de água é, sem dúvida, o fator mais crítico para a sobrevivência da planta em condições de estresse. Quando a disponibilidade de água no solo é baixa ou a demanda transpiratória é muito alta (baixa umidade do ar), as plantas experimentam estresse hídrico. Em resposta, há uma produção e transporte do hormônio ácido abscísico (ABA) para as células-guarda, que induz rapidamente o fechamento dos estômatos para minimizar a perda de água por transpiração, mesmo que isso signifique uma redução temporária na fotossíntese. Este é um mecanismo de autoproteção vital. A temperatura também desempenha um papel significativo. Temperaturas moderadas geralmente promovem a abertura estomática, mas temperaturas extremas (muito altas ou muito baixas) podem levar ao fechamento. Temperaturas muito altas podem aumentar excessivamente a transpiração, levando a um risco de desidratação, e podem inibir a atividade enzimática da fotossíntese, tornando o ganho de CO2 menos eficiente. Em resumo, a planta integra informações de todos esses fatores ambientais através de complexas vias de sinalização para ajustar a abertura estomática, mantendo um delicado equilíbrio entre a aquisição de carbono e a conservação de água, uma verdadeira lição de fisiologia vegetal que pode ser explorada em aulas e exercícios sobre adaptações vegetais.
Como a luz afeta a regulação estomática e qual o papel dos fotorreceptores?
A luz é o principal sinal ambiental que desencadeia a abertura dos estômatos na maioria das plantas, permitindo a fotossíntese. O processo não é simples e envolve a ação de diferentes comprimentos de onda e fotorreceptores específicos nas células-guarda. Existem dois componentes principais na resposta estomática à luz: a resposta à luz azul e a resposta à luz vermelha, que geralmente ocorre em conjunto com a luz azul, através da fotossíntese. A luz azul é o estímulo mais potente e direto para a abertura estomática. Ao ser absorvida por fotorreceptores específicos, principalmente as fototropinas (como phot1 e phot2), presentes na membrana plasmática das células-guarda, uma cascata de sinalização é iniciada. A ativação das fototropinas leva à ativação de uma bomba de prótons (H+-ATPase) na membrana plasmática. Essa bomba impulsiona íons H+ para fora das células-guarda, criando um potencial elétrico negativo através da membrana e diminuindo o pH externo. Essa alteração no potencial de membrana (hiperpolarização) abre canais de íons potássio (K+) sensíveis à voltagem, permitindo o influxo massivo de K+ para o citosol das células-guarda. Para equilibrar as cargas elétricas e a pressão osmótica, há também o influxo de íons cloreto (Cl-) e a síntese de malato. O acúmulo desses solutos no vacúolo central das células-guarda diminui drasticamente o potencial hídrico, fazendo com que a água entre por osmose, aumentando a pressão de turgor e causando a abertura do ostíolo. A luz vermelha, por outro lado, age indiretamente. Ela é absorvida pela clorofila nas células-guarda (que, ao contrário de outras células epidérmicas, contêm cloroplastos) e impulsiona a fotossíntese. A fotossíntese nas células-guarda produz ATP, que é a fonte de energia para a bomba de prótons, e também consome CO2 intracelular. A redução na concentração de CO2 nas células-guarda é um sinal adicional para a abertura estomática, pois remove uma inibição no processo. Os fotorreceptores não atuam isoladamente; eles interagem com outros sinais, como a concentração de CO2 e os níveis de ácido abscísico (ABA), para modular a resposta estomática. Em resumo, a luz, através de fotorreceptores específicos como as fototropinas e o processo de fotossíntese, desencadeia uma série de eventos iônicos e osmóticos que levam ao aumento da turgidez das células-guarda e à subsequente abertura dos estômatos, permitindo a otimização da troca gasosa para a produção de energia na planta. Este é um tema central para qualquer aula de fisiologia vegetal e pode ser explorado em exercícios que simulem diferentes condições de luz.
Explique a relação entre a concentração de CO2 intracelular e o movimento estomático.
A concentração de dióxido de carbono (CO2) no espaço intercelular da folha (referida como Ci ou CO2 intracelular) é um dos reguladores mais importantes e sensíveis da abertura e do fechamento dos estômatos. A relação é de feedback negativo: quando a Ci está baixa, os estômatos tendem a abrir-se para permitir a entrada de mais CO2. Por outro lado, quando a Ci está alta, os estômatos tendem a fechar-se para conservar água. Esse mecanismo é crucial porque as células do mesofilo precisam de CO2 para realizar a fotossíntese. Uma baixa Ci indica que a planta está utilizando CO2 rapidamente (devido à alta taxa fotossintética, como em condições de luz intensa) e precisa de mais para manter a fotossíntese eficiente. Nesse cenário, as células-guarda detectam essa baixa Ci e respondem promovendo a abertura do ostíolo. O mecanismo pelo qual as células-guarda percebem e respondem à Ci é complexo e envolve mudanças no pH citosólico e na atividade de várias enzimas. Uma das hipóteses mais aceitas sugere que a baixa Ci leva a um aumento do pH citosólico nas células-guarda. Essa alteração no pH ativa a bomba de prótons (H+-ATPase) na membrana plasmática, que por sua vez promove o influxo de íons potássio (K+) e outros solutos, levando ao aumento da turgidez e à abertura estomática, como descrito anteriormente. Inversamente, quando a Ci está alta, a demanda por CO2 para a fotossíntese pode ser menor (por exemplo, em condições de pouca luz, quando a fotossíntese está limitada, ou durante a noite, quando não há fotossíntese) ou a planta está sob algum estresse que impede a assimilação de carbono. Uma alta Ci sinaliza para as células-guarda que não há necessidade urgente de mais CO2 e que a perda de água associada à abertura estomática seria desnecessária e prejudicial. Nesse caso, a alta Ci leva ao abaixamento do pH citosólico e à inativação da bomba de prótons, o que subsequentemente leva ao efluxo de íons K+ das células-guarda, perda de turgor e fechamento do estômato. Esse sistema de feedback é vital para a eficiência do uso da água (EUA) pela planta, que é a quantidade de carbono assimilado por unidade de água perdida. Ao modular a abertura estomática em resposta à Ci, a planta otimiza a captação de carbono enquanto minimiza a perda de água desnecessária. Em uma aula, este tópico pode ser ilustrado com gráficos que mostram a relação entre Ci, transpiração e taxa de fotossíntese, sendo um excelente ponto de partida para exercícios de interpretação de dados.
De que forma a disponibilidade de água no solo e a umidade do ar impactam diretamente a função estomática?
A disponibilidade de água no solo e a umidade do ar são dois dos fatores mais críticos que influenciam diretamente a função estomática, pois a principal função regulada pelos estômatos, a transpiração, é essencialmente a perda de vapor d’água para a atmosfera. A planta precisa manter um equilíbrio hídrico adequado para sobreviver e crescer. Quando a disponibilidade de água no solo é abundante, as raízes absorvem água eficientemente, mantendo a planta hidratada e com alto potencial hídrico. Nessas condições, os estômatos tendem a permanecer abertos em resposta a outros sinais (como a luz e baixos níveis de CO2) para maximizar a fotossíntese, pois o risco de desidratação é baixo. No entanto, quando o solo começa a secar e a disponibilidade de água diminui (o que é conhecido como estresse hídrico ou seca), o potencial hídrico da planta diminui. As células-guarda detectam essa deficiência hídrica de várias maneiras, sendo a mais importante através do sinal hormonal. O hormônio vegetal ácido abscísico (ABA) é sintetizado nas raízes e folhas em resposta ao estresse hídrico e transportado para as células-guarda. O ABA atua rapidamente, desencadeando o efluxo de íons potássio (K+) e cloreto (Cl-) das células-guarda, seguido pela perda de água por osmose. Isso resulta na diminuição da turgidez das células-guarda e no consequente fechamento do ostíolo. Esse fechamento é uma medida de emergência vital para conservar a água e evitar a desidratação letal da planta, mesmo que isso signifique uma redução drástica na captação de CO2 e, consequentemente, na fotossíntese. A umidade do ar, ou mais precisamente, o déficit de pressão de vapor (DPV) entre a folha e o ar, também exerce um controle significativo sobre a transpiração e, por extensão, sobre a função estomática. Quando a umidade do ar é baixa (alta DPV), a diferença na concentração de vapor d’água entre o interior da folha saturado de umidade e o ar seco externo é grande. Isso cria uma força motriz muito forte para a perda de água por transpiração através dos estômatos abertos. Para evitar uma perda excessiva de água sob tais condições, as plantas respondem com um fechamento parcial ou total dos estômatos, mesmo que haja água abundante no solo. Este mecanismo de “fechamento hidropassivo” é uma resposta direta à taxa de transpiração e pode ser mediado por sinais hidráulicos ou hormonais. Em altas umidades (baixa DPV), a taxa de transpiração diminui e os estômatos tendem a permanecer mais abertos. Portanto, tanto a escassez de água no solo quanto o ar seco atuam como sinais para a planta priorizar a conservação de água sobre a aquisição de carbono, modulando finamente a abertura e o fechamento dos estômatos para manter a homeostase hídrica. Este tema é crucial para exercícios que simulem cenários de seca ou alta umidade, mostrando a capacidade de adaptação das plantas.
Qual o papel do hormônio ácido abscísico (ABA) na resposta das plantas ao estresse hídrico via regulação estomática?
O ácido abscísico (ABA) é um hormônio vegetal, frequentemente referido como o “hormônio do estresse”, devido ao seu papel central na mediação das respostas das plantas a diversas condições adversas, especialmente o estresse hídrico. No contexto da regulação estomática, o ABA atua como um sinal crucial que leva ao fechamento rápido e eficiente dos estômatos quando a planta está enfrentando condições de seca ou baixa disponibilidade de água no solo. A ação do ABA é fundamental para a sobrevivência da planta em ambientes áridos ou durante períodos de pouca chuva, pois permite a conservação de água em detrimento da fotossíntese, um compromisso necessário para evitar a desidratação e a morte. Quando a planta detecta uma diminuição no potencial hídrico do solo (devido à seca) ou um aumento na taxa de transpiração (devido à baixa umidade do ar), ocorre um aumento significativo na síntese de ABA. Este hormônio é sintetizado tanto nas raízes, onde a deficiência de água é inicialmente detectada, quanto nas folhas, especificamente nas células do mesofilo e células-guarda. O ABA produzido nas raízes é transportado via xilema até as folhas, onde atua nas células-guarda. Ao chegar às células-guarda, o ABA se liga a receptores específicos na membrana plasmática e no citosol, desencadeando uma complexa cascata de sinalização intracelular. Essa cascata envolve a ativação de quinases e fosfatases que levam a várias respostas, mas a mais importante para o fechamento estomático é a indução do efluxo de íons das células-guarda. O ABA promove a abertura de canais de ânions (como Cl- e malato) e a inibição de canais de íons potássio (K+) que normalmente mediam o influxo. Além disso, o ABA também ativa canais de K+ que permitem o efluxo de K+ para fora da célula. O resultado combinado desse movimento iônico é uma rápida perda de solutos (K+, Cl-, malato) do citosol e do vacúolo das células-guarda. A diminuição da concentração de solutos dentro das células-guarda eleva seu potencial hídrico, fazendo com que a água saia por osmose para as células epidérmicas circundantes ou para o apoplasto. A perda de água resulta na diminuição da pressão de turgor dentro das células-guarda, levando-as a murchar e, consequentemente, ao fechamento do ostíolo. Esse fechamento reduz drasticamente a perda de água por transpiração, protegendo a planta da desidratação. Embora o fechamento estomático sob estresse hídrico reduza a fotossíntese, é uma estratégia de sobrevivência essencial, permitindo que a planta conserve seus recursos hídricos até que as condições melhorem. A modulação dos estômatos pelo ABA é um excelente tópico para aulas avançadas de fisiologia vegetal e exercícios que explorem a plasticidade das plantas em resposta ao ambiente.
Além da transpiração, que outras funções essenciais os estômatos desempenham para a sobrevivência da planta?
Embora a transpiração (a liberação de vapor d’água) seja a função mais amplamente reconhecida e quantitativamente maior dos estômatos, eles são, na verdade, portões multifuncionais que desempenham papéis igualmente essenciais na sobrevivência e no metabolismo da planta. A principal função além da transpiração é a troca gasosa de CO2 e O2, que é fundamental para os dois processos metabólicos mais vitais das plantas: a fotossíntese e a respiração. A entrada de dióxido de carbono (CO2) é, sem dúvida, a função mais crítica para a nutrição da planta. O CO2 atmosférico é a fonte de carbono para a fotossíntese, o processo pelo qual as plantas convertem energia luminosa em energia química, produzindo açúcares. Para que a fotossíntese ocorra, o CO2 deve difundir-se da atmosfera, através do ostíolo estomático, para o espaço intercelular da folha e, em seguida, para o interior das células do mesofilo e seus cloroplastos, onde a fixação de carbono ocorre. A abertura estomática é diretamente proporcional à taxa de difusão de CO2 para o interior da folha. Sem a abertura dos estômatos, a planta não conseguiria obter CO2 suficiente para sustentar a fotossíntese em níveis adequados para o crescimento e manutenção. Consequentemente, a produção de biomassa e a liberação de oxigênio para a atmosfera seriam severamente comprometidas. Paralelamente à entrada de CO2, os estômatos também permitem a saída de oxigênio (O2), que é um subproduto da fotossíntese. O O2 produzido nos cloroplastos difunde-se para o espaço intercelular e, em seguida, para a atmosfera através dos estômatos. Este é um aspecto vital para a manutenção da atmosfera terrestre rica em oxigênio e para a vida aeróbica. Embora em menor grau, os estômatos também desempenham um papel na respiração celular. Durante a respiração, as plantas absorvem O2 e liberam CO2. Embora a maior parte dessas trocas em tecidos não fotossintéticos ocorra via difusão através da superfície da epiderme ou lenticelas, nas folhas, os estômatos facilitam essas trocas, especialmente durante a noite, quando a fotossíntese não está ocorrendo. Além das trocas gasosas diretas para fotossíntese e respiração, a regulação estomática influencia indiretamente a temperatura da folha. A transpiração é um processo de resfriamento evaporativo; a perda de vapor d’água dissipa o calor latente, ajudando a evitar o superaquecimento da folha, especialmente sob luz solar intensa. Se os estômatos permanecessem fechados em um dia quente e ensolarado, a folha poderia superaquecer a níveis prejudiciais. Portanto, os estômatos não são apenas válvulas de água, mas sim reguladores multifacetados que orquestram a obtenção de carbono, a liberação de oxigênio e a termorregulação, garantindo a vitalidade e a produtividade das plantas em seu ambiente. Em aulas e exercícios, é fundamental enfatizar essa complexidade e interconexão de funções.
Como a abertura e o fechamento dos estômatos podem ser explorados em exercícios práticos e experimentos educacionais?
A compreensão da abertura e do fechamento dos estômatos é um tópico fundamental na biologia vegetal, e há diversas maneiras de explorá-lo em exercícios práticos e experimentos educacionais, desde o nível básico até o avançado. Essas atividades podem ajudar os alunos a visualizar conceitos abstratos e a desenvolver habilidades científicas. Um dos experimentos mais clássicos e acessíveis é a observação microscópica direta dos estômatos. Os alunos podem preparar lâminas de epiderme foliar (geralmente da face abaxial de folhas como as de tradescança ou de Allium cepa, a cebola, embora esta tenha estômatos incomuns) e observar a estrutura das células-guarda e do ostíolo. Para demonstrar o movimento, podem-se aplicar soluções com diferentes potenciais osmóticos (por exemplo, água destilada para induzir turgor e solução salina concentrada para induzir plasmólise e fechamento) e observar as mudanças em tempo real sob o microscópio. Isso ilustra o papel da osmose. Outro exercício prático envolve a medição indireta da densidade estomática usando o método da impressão epidérmica ou da “fita adesiva”. Os alunos aplicam esmalte incolor ou fita adesiva transparente na superfície da folha, removem-na após secagem e a colam em uma lâmina de microscópio para observar e contar os estômatos em uma área definida. Isso permite comparar a densidade estomática em diferentes espécies ou em folhas de diferentes ambientes (sol vs. sombra), gerando dados para análise estatística. Para explorar o impacto dos fatores ambientais, experimentos de transpiração em vasos ou com o uso de um potômetro são excelentes. Os alunos podem expor plantas a diferentes condições (luz intensa vs. sombra, alta umidade vs. baixa umidade, solo seco vs. solo úmido) e medir a taxa de perda de água ao longo do tempo. A análise dos resultados demonstra como os estômatos respondem para regular a transpiração. Para uma abordagem mais avançada, pode-se usar um porômetro, um instrumento que mede diretamente a condutância estomática (a facilidade com que o vapor d’água se difunde através dos estômatos). Isso permite quantificar a abertura estomática em resposta a variações de luz, CO2 ou estresse hídrico de forma precisa. Exercícios de interpretação de dados e gráficos também são valiosos. Os alunos podem analisar conjuntos de dados que mostram a relação entre a condutância estomática, a taxa de fotossíntese, a concentração de CO2 intracelular e o potencial hídrico foliar sob diferentes condições experimentais. Isso estimula o pensamento crítico e a compreensão das interações fisiológicas. Simulações computacionais ou vídeos de lapso de tempo que mostram o movimento estomático podem complementar as atividades práticas. O objetivo desses exercícios é fornecer uma experiência prática e investigativa que reforce os conceitos teóricos, permitindo que os alunos vejam a fisiologia vegetal em ação e compreendam a importância adaptativa do controle estomático.
Quais são as principais diferenças e adaptações estomáticas em plantas de diferentes ambientes (ex: xerófitas, hidrófitas, mesófitas)?
As plantas desenvolveram uma notável diversidade de adaptações estomáticas para sobreviver em ambientes com diferentes disponibilidades de água, refletindo a pressão seletiva do meio. As principais categorias são as xerófitas (plantas de ambientes secos), hidrófitas (plantas de ambientes aquáticos) e mesófitas (plantas de ambientes com disponibilidade moderada de água). As mesófitas, que representam a maioria das plantas terrestres encontradas em climas temperados ou tropicais com disponibilidade de água regular, possuem estômatos localizados predominantemente na face abaxial (inferior) da folha. Isso ajuda a reduzir a perda de água direta pela radiação solar intensa na face adaxial. Sua densidade estomática é moderada, e a regulação da abertura e fechamento é flexível, respondendo prontamente à luz (abertura durante o dia para fotossíntese) e ao estresse hídrico (fechamento em caso de seca). Seu mecanismo de controle é o padrão descrito, otimizando o equilíbrio entre captação de CO2 e conservação de água. As xerófitas, adaptadas a ambientes áridos com escassez de água (desertos, estepes), exibem as adaptações estomáticas mais impressionantes e extremas para minimizar a perda de água. Elas frequentemente possuem estômatos em menor número e localizados em criptas estomáticas ou depressões na superfície da folha, que criam um microambiente úmido ao redor do poro, reduzindo o gradiente de pressão de vapor e, consequentemente, a transpiração. Outra adaptação comum é a presença de tricomas (pelos) na superfície da folha, que também retêm uma camada de ar úmido. Em muitas xerófitas suculentas, como os cactos e algumas bromélias, ocorre o metabolismo ácido das crassuláceas (CAM). Nessas plantas, os estômatos permanecem fechados durante o dia para evitar a perda de água em condições de calor e luz intensos, e abrem-se apenas durante a noite para captar CO2. O CO2 é armazenado como ácidos orgânicos e liberado internamente durante o dia para a fotossíntese. Este é um mecanismo radical de conservação de água. As hidrófitas, que vivem em ambientes aquáticos, apresentam adaptações estomáticas muito diferentes, pois a água não é um fator limitante. Em plantas aquáticas flutuantes (como vitórias-régias), os estômatos estão localizados exclusivamente na face adaxial (superior) da folha, a única superfície em contato com o ar, para facilitar as trocas gasosas. A densidade estomática pode ser alta, e a regulação é menos focada na conservação de água. Em plantas aquáticas submersas, os estômatos são praticamente ausentes, pois as trocas gasosas ocorrem diretamente pela difusão através da superfície da epiderme para a água circundante, já que o CO2 está dissolvido na água e a perda de água não é uma preocupação. Essas adaptações ilustram a plasticidade evolutiva das plantas e a importância dos estômatos como uma característica chave na sua capacidade de colonizar e prosperar em praticamente todos os biomas terrestres e aquáticos, sendo um tópico rico para aulas de ecologia e fisiologia comparada.
| 💡️ Abertura e fechamento dos estômatos: Resumo, Aula e Exercícios | |
|---|---|
| 👤 Autor | Marco Aurélio |
| 📝 Bio do Autor | |
| 📅 Publicado em | junho 30, 2025 |
| 🔄 Atualizado em | setembro 13, 2026 |
| 🏷️ Categorias | Biologia |
| ⬅️ Post Anterior | A visão nos invertebrados: Resumo, Aula e Exercícios |
| ➡️ Próximo Post | Aborto: Resumo, Aula e Exercícios |
| 🔗 Compartilhe este conteúdo com seus amigos! | |
|---|---|
 Facebook |
Compartilhar |
 X |
Postar |
 WhatsApp |
Enviar |
 LinkedIn |
Compartilhar |
 Pinterest |
Pin |
 Reddit |
Postar |
 Tumblr |
Reblogar |
 Email |
Enviar e-mail |